Khi chúng ta bước vào một căn phòng lạnh, cơ thể ngay lập tức phản ứng bằng cách run rẩy để sinh nhiệt từ cơ bắp. Nhưng sâu bên trong các mô mỡ nâu nằm ở vùng cổ và xương đòn, một phép màu sinh học tinh vi hơn nhiều đang diễn ra: sinh nhiệt không run. Trong suốt nửa thế kỷ, giới y khoa tin rằng protein UCP1 nằm ở màng trong ty thể là chiếc chìa khóa duy nhất mở ra cánh cửa này bằng cách triệt tiêu gradient proton để tỏa nhiệt. Quan niệm này đã dẫn đến sự thất bại của hàng loạt thử nghiệm lâm sàng nhằm kích hoạt UCP1 để giảm cân, do cơ thể luôn tìm cách bù trừ năng lượng. Sự thật chỉ được hé lộ khi các nhà khoa học phát hiện ra rằng, ngay cả khi không có UCP1, cơ thể vẫn sở hữu một mạng lưới sinh nhiệt dự phòng vô cùng mạnh mẽ. Đó là sự kết hợp giữa chu trình creatine vô nghĩa và tín hiệu succinate ngoại bào. Khám phá này không chỉ đập tan định kiến cũ mà còn mở ra một chương mới trong việc điều trị các bệnh lý chuyển hóa mạn tính.
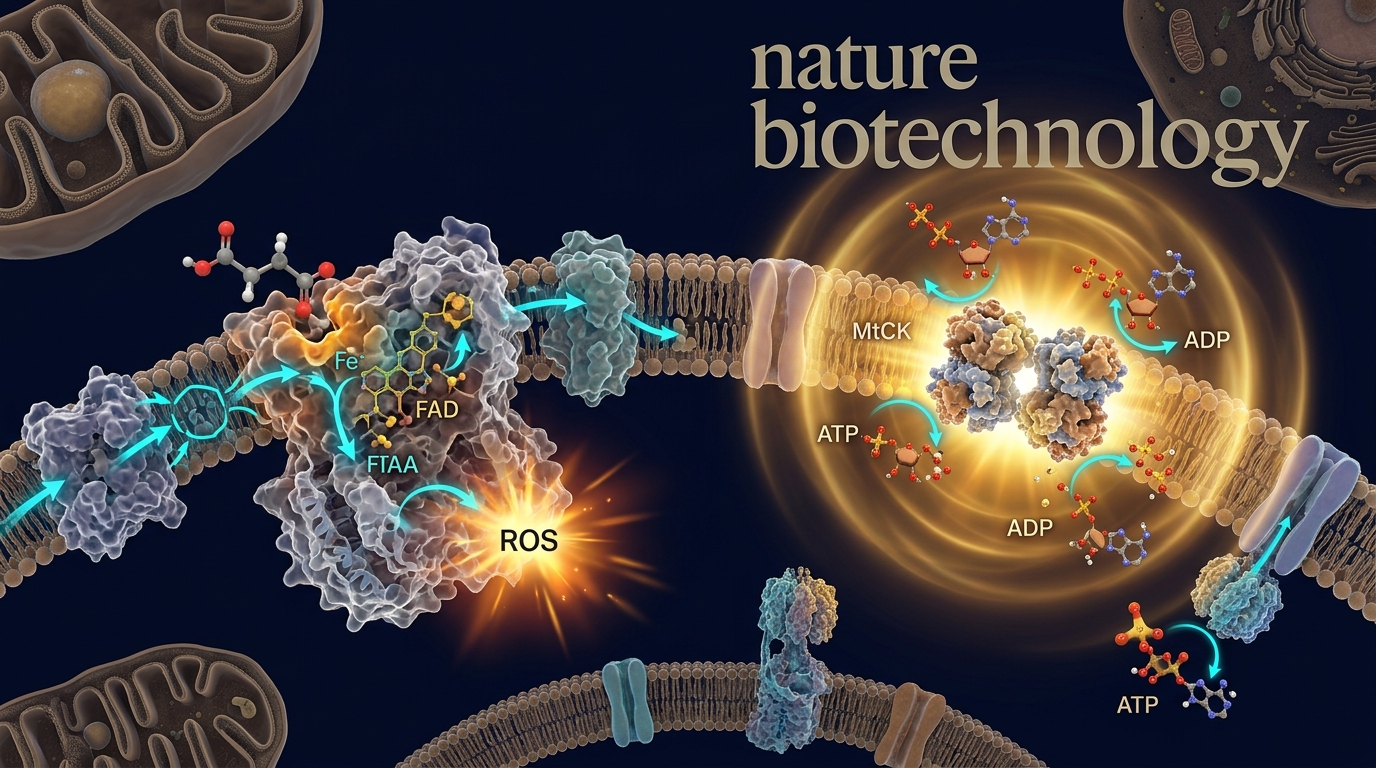
"Hãy tưởng tượng ty thể của tế bào mỡ nâu giống như một nhà máy nhiệt điện khổng lồ. Cơ chế sinh nhiệt truyền thống qua UCP1 giống như việc mở toang một chiếc van xả áp trực tiếp trên lò hơi: thay vì dùng áp suất hơi nước để quay tuabin tạo ra điện năng (ATP), nhà máy chủ động xả hơi nước ra ngoài để giải phóng năng lượng dưới dạng nhiệt thuần túy. Trong khi đó, chu trình creatine vô nghĩa hoạt động như một hệ thống bơm nước tuần hoàn liên tục chạy không tải. Nước được bơm lên cao rồi lại đổ xuống ngay lập tức mà không phục vụ mục đích sản xuất nào, tiêu tốn năng lượng của động cơ và tỏa ra nhiệt lượng cực lớn do ma sát hệ thống. Sự tích tụ succinate đóng vai trò như một chất xúc tác sinh học, làm tăng tốc độ quay của máy bơm này lên gấp nhiều lần."
Sơ đồ cơ chế truyền tín hiệu phân tử
Tiếp xúc lạnh/Kích hoạt Adrenergic
Tích tụ Succinate nội bào
Oxy hóa Succinate qua SDH (Phức hợp II)
Tăng ROS chọn lọc
Kích hoạt Chu trình Creatine vô nghĩa qua CKMT1A/1B
Thủy phân ATP liên tục
Giải phóng nhiệt lượng vượt trội
1. Bản đồ phân tử: Sự trỗi dậy của chu trình Creatine vô nghĩa và thụ thể GPR91
Để hiểu được sự đột phá này, chúng ta cần đi sâu vào cấu trúc ty thể của tế bào mỡ nâu và mỡ beige. Con đường sinh nhiệt truyền thống dựa vào protein UCP1 (Uncoupling Protein 1), chất đóng vai trò như một kênh rò rỉ proton qua màng trong ty thể, làm mất gradient điện hóa mà không tạo ra ATP. Ngược lại, con đường độc lập UCP1 hoạt động thông qua một cơ chế hoàn toàn khác: chu trình creatine vô nghĩa (creatine futile cycle).
Trong chu trình này, enzym creatine kinase ty thể (CKMT1A và CKMT1B) chuyển nhóm phosphate từ ATP sang creatine để tạo thành phosphocreatine (PCr). Ngay sau đó, enzym phosphatase kiềm không đặc hiệu mô (TNAP - Tissue-Nonspecific Alkaline Phosphatase) sẽ thủy phân phosphocreatine để giải phóng lại creatine và phosphate vô cơ (Pi). Phản ứng này tiêu tốn một lượng ATP khổng lồ mà không thực hiện bất kỳ công cơ học nào, chuyển hóa toàn bộ năng lượng liên kết phosphate thành nhiệt năng.
Đồng thời, sự tích tụ của succinate (một chất trung gian của chu trình TCA) đóng vai trò là ngòi nổ cho quá trình này. Khi tế bào tiếp xúc với kích thích lạnh, succinate được vận chuyển tích cực vào ty thể thông qua chất vận chuyển dicarboxylate và bị oxy hóa nhanh chóng bởi enzym succinate dehydrogenase (SDH, còn gọi là Phức hợp II). Quá trình oxy hóa cực nhanh này tạo ra dòng điện tử quá tải, dẫn đến hiện tượng rò rỉ điện tử ngược và sản sinh các gốc oxy hóa hoạt động (ROS - Reactive Oxygen Species) chọn lọc. Chính tín hiệu ROS này kích hoạt mạnh mẽ chu trình creatine vô nghĩa, đẩy tốc độ tiêu thụ năng lượng lên mức tối đa.
2. Nghịch lý sinh học của sự rò rỉ năng lượng: UCP1 so với Cơ chế độc lập UCP1
Nghịch lý sinh học lớn nhất nằm ở chỗ: tại sao cơ thể lại duy trì hai hệ thống sinh nhiệt song song? Các nghiên cứu lâm sàng chỉ ra rằng việc kích hoạt kéo dài hệ adrenergic để kích thích UCP1 thường dẫn đến hiện tượng trơ thụ thể (desensitization) và gây ra các tác dụng phụ tim mạch nghiêm trọng như tăng huyết áp và nhịp tim nhanh. Ngược lại, chu trình creatine vô nghĩa được điều hòa bởi các tín hiệu chuyển hóa nội bào như succinate và nồng độ ATP/ADP, giúp duy trì khả năng sinh nhiệt ổn định mà không làm quá tải hệ thần kinh giao cảm.
Dưới đây là bảng so sánh chi tiết giữa hai cơ chế sinh nhiệt này:
| Tiêu chí so sánh | Con đường phụ thuộc UCP1 | Con đường độc lập UCP1 (Creatine-Driven) |
|---|---|---|
| Cơ chế cốt lõi | Rò rỉ proton qua màng trong ty thể | Chu trình phosphoryl hóa và khử phosphoryl hóa creatine liên tục |
| Enzym chủ chốt | UCP1 (Uncoupling Protein 1) | CKMT1A/1B, TNAP (Tissue-Nonspecific Alkaline Phosphatase) |
| Chất kích hoạt chính | Acid béo tự do kích hoạt trực tiếp UCP1 | Succinate, ROS chọn lọc từ Phức hợp II (SDH) |
| Tiêu thụ ATP | Không tiêu thụ ATP (ngăn chặn tổng hợp ATP) | Tiêu thụ lượng lớn ATP trực tiếp từ tế bào |
| Hệ thống điều hòa | Thụ thể Beta-3 Adrenergic (giao cảm) | Tín hiệu chuyển hóa nội bào và thụ thể GPR91 |
| Tính bền vững lâm sàng | Dễ bị lờn thuốc (receptor desensitization) | Bền vững, ít tác dụng phụ lên hệ tim mạch |
3. Ứng dụng thực tế & Chiến lược lâm sàng trong y học trường thọ
Dựa trên các khám phá mới về chu trình creatine vô nghĩa và tín hiệu succinate, các chuyên gia y học trường thọ đề xuất ba chiến lược lâm sàng cụ thể để tối ưu hóa quá trình chuyển hóa và giảm mỡ nội tạng:
-
Liệu pháp tiếp xúc lạnh chủ động (Deliberate Cold Exposure): Tiếp xúc với nhiệt độ lạnh (10 đến 14 độ C) trong 10-15 phút mỗi ngày kích hoạt sự tích tụ succinate trong mô mỡ nâu, khởi động chu trình sinh nhiệt mà không cần tập luyện cường độ cao.
-
Bổ sung Creatine kết hợp kích hoạt nhiệt: Việc bổ sung creatine monohydrate (3-5g/ngày) không chỉ hỗ trợ cơ bắp mà còn cung cấp cơ số chất (substrate) dồi dào cho chu trình creatine vô nghĩa tại mô mỡ beige, đặc biệt hiệu quả khi kết hợp với liệu pháp lạnh.
-
Tối ưu hóa hoạt động của Succinate Dehydrogenase (SDH): Sử dụng các chất đồng vận hoặc tiền chất như Coenzyme Q10 và các cofactor chu trình TCA (như Vitamin B2, B3) giúp tăng cường hiệu suất oxy hóa succinate, thúc đẩy quá trình browning (hóa nâu) của mỡ trắng (WAT) thành mỡ beige.